基于 m6A-ARTR-DBiT 的空间分辨 m6A 修饰图谱分析
m6A是一种广泛存在于RNA上的化学修饰,具有多种重要的调控功能。然而,m6A在组织中的空间分布特征目前仍知之甚少。本文提出了一种空间m6A图谱分析技术——m6A-ARTR-DBiT。该技术结合基于逆转录的检测方法与组织内确定性条形码技术(DBiT),能够在保留组织原位空间结构的基础上,对全转录组范围内的m6A分布进行空间定位和绘制。研究者将m6A-ARTR-DBiT应用于小鼠胚胎组织和成年小鼠脑组织,构建了具有空间分辨率的m6A图谱,并发现不同功能区域具有特异性的区域相关m6A特征。进一步将空间m6A图谱与空间转录组进行两两比较,发现m6A水平与其甲基转移酶及m6A结合蛋白的表达之间存在正相关关系。同时,该技术还能够系统鉴定组织区域特异性的表观转录组调控模式。在小鼠海马组织中,m6A-ARTR-DBiT能够以较高分辨率描绘精细组织结构中的m6A空间分布特征。总体而言,m6A-ARTR-DBiT为在完整组织切片中研究RNA修饰的空间分布提供了一种新的技术平台,有助于揭示具有空间特异性的m6A沉积模式与基因表达调控之间的联系。本文于2026年6月发表于nature methods(IF=28.3)上。
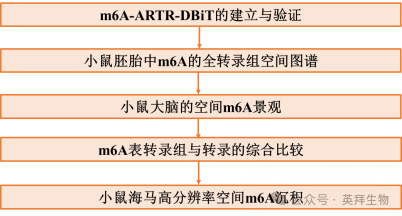
技术路线:
结果:
1)m6A-ARTR-DBiT的建立与验证
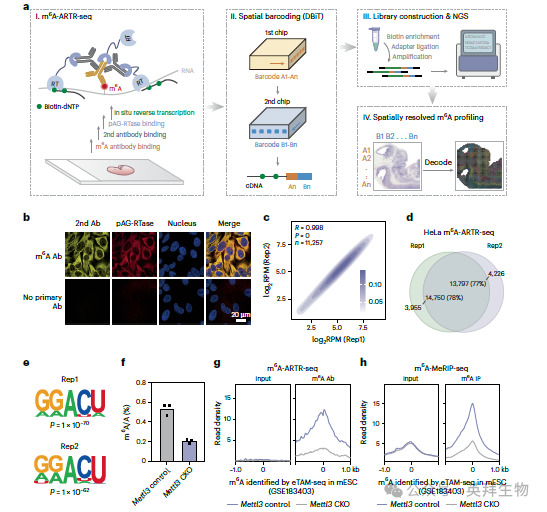
m6A-ARTR-DBiT工作流程如图1a所示。为验证 m6A-ARTR-seq 的检测性能,我们首先在HeLa细胞中进行了系统性评估。结果显示,pAG-RTase与二抗呈现明显的共定位(图1b),表明m6A信号主要分布于HeLa细胞的细胞质中。此外,重复实验在测序reads和m6A峰(peak)水平均表现出较高的重复性(图1c、d)。检测到的m6A峰主要富集于终止密码子(stop codon)附近,并呈现经典的 “RRACU”共识序列基序(R=A/G)(图1e)。接下来,我们使用条件敲除Mettl3 (CKO)小鼠胚胎干细胞(mESCs)评估m6A-ARTR-seq转录组的特异性。CKO实现了47%的敲除效率,m6A/A比降低了61%(图1f)。然后,我们对这些细胞进行m6A-ARTR-seq,使用我们之前生成的m6A-MeRIP-seq数据作为对照,并与抗体独立方法获得的结果进行基准比对。在Mettl3对照细胞中,两项检测均显示eTAM-seq m6A位点明显富集。在Mettl3 CKO后,富集显著降低,证实检测到的信号依赖于Mettl3而不是抗体脱靶(图1g,h)。
2)小鼠胚胎中m6A的全转录组空间图谱
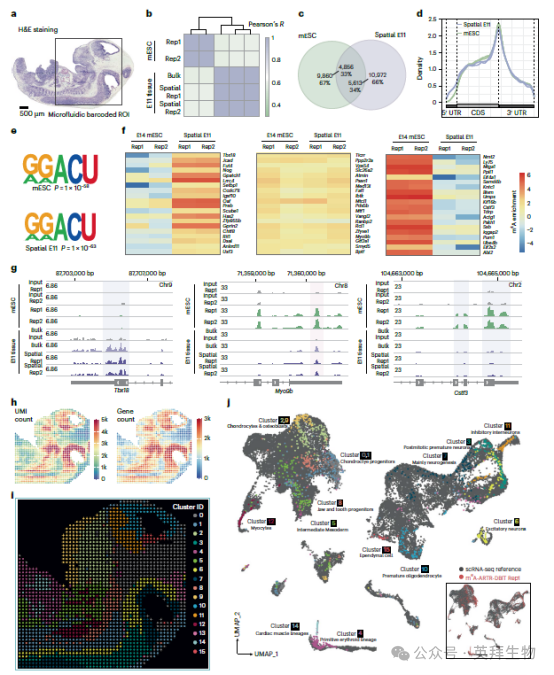
我们使用50 μm像素大小的装置将m6A-ARTR-DBiT应用于胚胎第11天(E11)小鼠胚胎切片(图2a)。作为整体水平的对照,我们对胚胎第14天(E14) mESCs和E11切片进行了m6A-ARTR-seq,没有进行空间条形码。基因水平的信号聚类在生物重复之间显示出高再现性(图2b)。此外,E11组织的m6A-ARTR-seq结果与带或不带空间条形码的结果之间存在很强的相关性,证实了空间条形码连接的影响可以忽略不计。组织和mESCs之间的m6A信号对比分析显示出不同的特征,只有大约34%的m6A峰重叠(图2b、c)。接下来,我们检查了mRNA的峰分布,发现与mESCs相比,E11组织中的m6A峰在5 '非翻译区(UTR)富集略高,在编码序列(CDS)和停止密码子富集较少(图2d)。我们进一步探索了峰值序列特征,并在mESCs和E11组织中观察到一致的基序‘ RRACU ’,反映了小鼠样本中一致的m6A基序(图2e)。然后,我们系统地比较了E11胚胎和mESCs之间m6A峰的富集程度,确定了甲基化或保守的m6A峰的差异(图2f,g)。总的来说,这些结果强调了m6A-ARTR-DBiT在整体组织水平上的稳健性能。在E14 mESCs和E11组织中观察到的不同m6A谱促使我们研究了E11组织切片中m6A的空间异质性。平均而言,m6A-ARTR-DBiT每像素检测到2359个仅有的分子标识符(UMIs)和1594个基因(图2h),其空间分布与组织形态和密度具有很强的一致性。通过对m6A信号的无监督聚类,我们确定了16个具有不同空间分布模式的聚类(图2i)。在hematoxylin和伊红(H&E)染色的邻近切片中观察到,空间UMAP密切反映了E11小鼠胚胎的组织学特征,突出了空间m6A映射描绘组织区域的潜力(图2a,i)。为了进一步识别每个集群中的细胞类型,我们将数据与E11.5小鼠器官发生的单细胞RNA测序(scRNA-seq)参考数据集整合(图2j)。得到的细胞类型注释与E11组织中的物理像素分布密切相关。
3)小鼠大脑的空间m6A景观
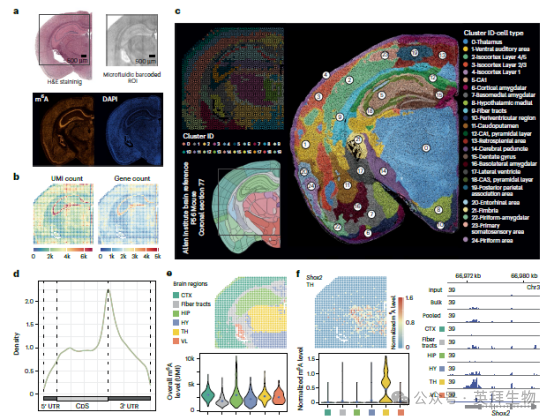
我们进一步将空间m6A-ARTR-DBiT分析扩展到小鼠冠状脑切片(图3a)。荧光团标记二抗的荧光成像显示m6A在同一组织切片上的整体分布,随后对其进行空间条形码和测序。平均而言,每50 μm像素捕获2,489个UMI和1,664个基因,UMI图谱密切反映了通过成像观察到的整体m6A分布(图3b)。基因像素矩阵的无监督聚类识别出20个空间组织的m6A集群(图3c)。为了实现单细胞空间分辨率,并将图谱扩展到整个脑组织切片,我们使用计算工具iStar,通过分层成像特征提取,将空间转录组数据与组织学图像整合,生成细胞分辨率的超分辨率空间m6A图谱。得到的空间m6A图与Allen小鼠脑图谱中参考脑切片(P56小鼠脑冠状切片77)的解剖注释非常吻合(图3c)。此外,我们检查了沿mRNA的峰和读分布,并观察到典型停止密码子富集,支持m6A-ARTR-DBiT的准确性和稳健性(图3d)。为了研究m6A修饰的区域差异,我们将感兴趣区域(ROI)重新分配到6个大脑解剖区域,并从每个区域内的像素中聚合m6A信号(图3e)。在整体m6A水平上,我们确定了具有区域特异性富集差异的基因。其中许多基因在各自的区域显示出很强的功能相关性。其中一个例子是Shox2,这是一个维持丘脑神经元功能的关键基因,在丘脑中主要表现出富集的m6A信号(图3f)。
4)m6A表转录组与转录的综合比较
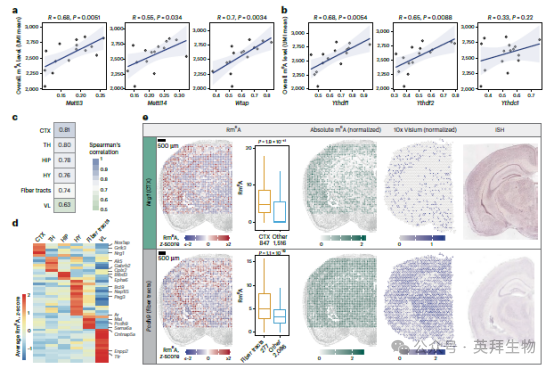
我们检测了调节m6A水平的关键m6A甲基转移酶组分(Mettl3,Mettl14和Wtap)和去甲基化酶(Fto和Alkbh5)。通过比较m6A-ARTR-DBiT衍生的m6A水平与Visium数据中相应的m6A相关效应酶的表达水平,我们发现m6A水平与小鼠大脑中Mettl3、Mettl14和Wtap的表达呈显著正相关(图4a)。此外,我们观察到m6A水平与m6A读取器蛋白Ythdf1和Ythdf2的表达呈正相关,而与Ythdc1的关联在统计学上不显著(图4b)。我们分析了m6A RPKM和RNA RPM在大脑六个解剖区域之间的相关性,得出Spearman相关系数范围为0.63至0.81(图4c)。为了鉴定具有不同m6A丰度的基因,我们比较了特定区域内像素的Rm6A值与其他区域的Rm6A值,揭示了这些基因中的许多与各自大脑区域特有的功能作用密切相关(图4d)。例如,在皮层中,Rm6A水平较高的基因包括参与神经元发育的Nrg1,以及Nos1ap37和Grik3,两者都对突触可塑性和神经传递至关重要(图4d,e)。在纤维束中,Pcdh9表现出更高的Rm6A水平,在突触粘附和连通性中发挥关键作用(图4e)。总之,这些发现表明了m6A相对丰度的区域差异,并强调了m6A-ARTR-DBiT作为研究m6A表转录组学的空间分辨率工具的必要性。
5)小鼠海马高分辨率空间m6A沉积
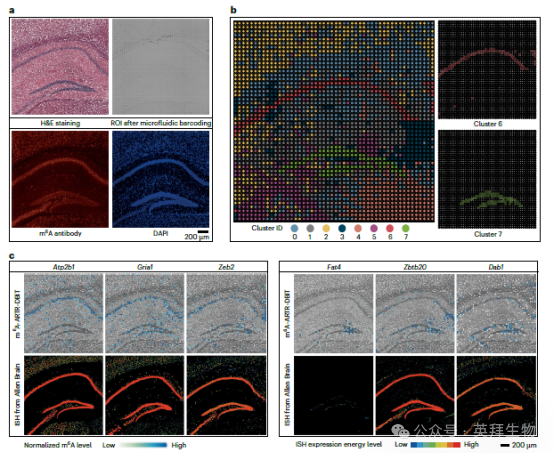
为了以更高的分辨率检测空间分辨m6A修饰,我们在小鼠脑切片上应用了一个20 μm像素大小的50 × 50通道微流控装置,主要关注海马区。无监督聚类揭示了七个空间聚类,准确地重建了小鼠海马的组织学结构(图5a,b)。值得注意的是,结构明确的簇6和簇7分别对应于CA1锥体层(CA1sp)和齿状回颗粒细胞层(DG-sg)(图5b)。差异基因分析揭示了基于m6A-ARTR-DBiT信号的脑区域特异性标记基因。例如,Atp2b1、Gria1和Zeb2在CA1sp中表现出较高的m6A信号,而Fat4、Zbtb20和Dab1在DG-sg中表现出丰富的m6A信号(图5c)。总之,高分辨率m6A-ARTR-DBiT显示了其稳健性和精确性,有助于详细探索m6A在精细组织结构中的分布和功能。
结论:
我们开发了 m6A-ARTR-DBiT 技术,用于对RNA上的m6A修饰进行高分辨率空间分析,从而实现对大范围组织区域及全转录组水平m6A调控模式的从头探索。该技术通过在固定组织切片内进行原位靶标识别和逆转录,并将生成的cDNA与DBiT空间条形码技术相结合,在避免RNA整体提取及遗传操作的同时,保留了组织的解剖学空间信息。因此,m6A-ARTR-DBiT能够在组织异质性背景下,对m6A修饰的空间分布模式进行高效且无偏倚的分析,有助于发现与特定组织区域相关的m6A调控模式,而这些模式在批量检测方法中可能因信号平均化而被掩盖。
参考文献:
Xiao Y, Bai Z, Zou Z, Ye C, Tao B, Zheng Z, Chen YM, Zou Z, Jiang L, Zhao L, Fan Y, Gao Y, Fan R, He C. Spatially resolved m6A profiling using m6A-ARTR-DBiT. Nat Methods. 2026 Jul;23(7):1318-1326. doi: 10.1038/s41592-026-03123-9